

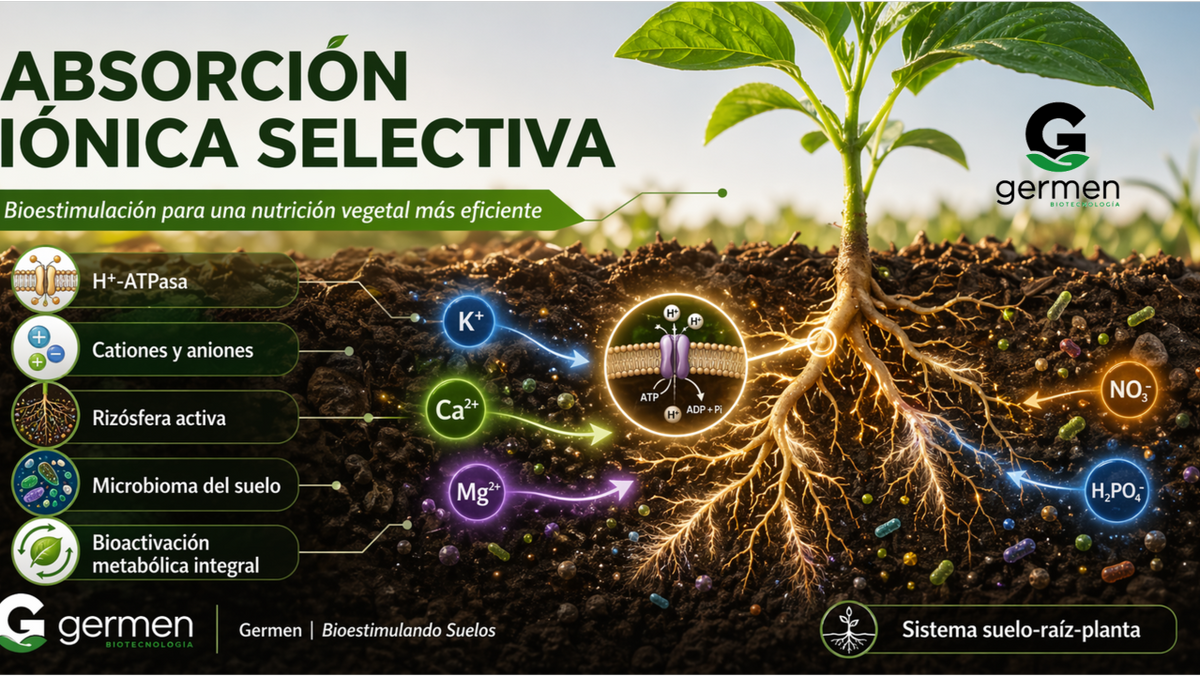
1. Introducción
En la agronomía, la nutrición vegetal suele interpretarse desde la disponibilidad de nutrientes en el suelo o desde el programa de fertilización. Sin embargo, entre la presencia de un ion en la solución del suelo y su incorporación efectiva a la planta existe una etapa decisiva: la capacidad fisiológica de la raíz para absorber de manera selectiva. Esa selectividad ocurre principalmente en la interfase raíz-suelo, donde los pelos radicales, la membrana plasmática y los sistemas de transporte determinan que nutrientes entran, en que cantidad y bajo que costo energético.
La absorción mineral, por tanto, no es un fenómeno pasivo ni automático. La raíz funciona como uin sistema dinámico que percibe el ambiente químico de la rizósfera, modifica su microentorno y actiova mecanismos de transporte capaces de discriminar entre cationes y aniones según las necesidades metabólicas de la planta. En ese proceso, la H+-ATPasas de membrana plasmática, ocupa un papel central, porque genera el gradiente electroquímico que energiza el ingreso de numerosos nutrientes y sostiene buena parte de la eficiencia de absorción.
Este punto es especialmente relevante en los sistemas agrícolas de México y Latinoamérica, donde la disponibilidad nutrimental frecuentemente esta limitada no solo por la dosis aplicada, sino por las condiciones edáficas que restringen la captación: pH alto o variable, salinidad, fijación de fósforo, baja materia orgánica, estrés hídrico, compactación o daño radicular. En esos escenarios, mejora la fisiología de la raíz puede ser tan importante como ajustar la fertilización, porque una planta con baja actividad transportadora o con escaso crecimiento radical difícilmente aprovechará al máximo los nutrientes presentes. Esta es una interferencia agronómica consistente con el papel de las H+-ATPasas en adquisición de nutrientes y con la definición de bioestmulantes orientados a mejorar la eficiencia nutrimental y tolerancia al estrés. Es aquí en donde los bioestimulantes orgánicos adquieren relevancia técnica. Más allá de su composición, se valoran por su capacidad de estimular procesos fisiológicos asociados con eficiencia de nutrición, crecimiento radicular y adaptación al estrés. En el caso de tecnologías como Germen Energy y Germen Energy REd, el enfoque va más allá de la estimulación radicular convencional. Su función se orienta a dinamizar la actividad celular y microbiológica el suelo y de la planta, promoviendo condiciones favorables para la liberación de nuitrientes bloqueados, transformación de moléculas recalcitrantes y la reactivación de procesos biogeoquímicos que suelen estar limitados en suelos degradados, salinos, contaminados o con alta carga de compuestos inmovilizados. Bajo esta lógica, la bioestimulación no se restringe a "empujar" el crecimiento de la raíz, sino a mejorar el entorno funcional intercambio catiónico, el equilibrio electroquímico del suelo y, en consecuencia, la eficiencia de aprovechamiento nutrimental. Desde esta perspectiva la absorción iónica selectiva de raíces debe entenderse como la expresión visible de un sistema mucho mas amplio, donde la fisiología vegetal depende estrechamente de la energética celular, de la actividad del microbioma y de las propiedades fisicoquímicas del suelo. Una solución orgánica metabólicamente activa puede contribuir no solo a estimular la H+-ATPasa, los procesos de transporte de membrana y el crecimiento radical, sino también a favorecer rutas facultativas de transformación que ayudan a desbloquear sulfatos, fosfatos, nitrógeno amoniacal, sales y otros compuestos retenidos o en formas poco disponibles, incluso en matrices no exclusivamente agrícolas. Este enfoque es particularmente valioso en condiciones de estrés químico o ambiental, donde el objetivo no es solo nutrir a la planta, sino rehabilitar la funcionalidad del sistema suelo-subsuelo, restaurar actividad biológica y generar un medio más dinámico para la absorción, la respiración radical y el metabolismo vegetal.
2. ¿Qué es la absorción iónica selectiva en raíces?
Es el proceso fisiológico mediante el cual la planta incorpora nutrientes minerales desde la solución del suelo a través de las células de la epidermis y, especialmente, de los pelos radicales, regulando que iones ingresan, en que cantidad, con que velocidad y bajo que condiciones energéeticas. No se trata de una entrada indiscriminada de sales, sino de un mecanismo de alta especificidad que permite a la raíz distinguir entre nutrientes úitiles, compuestos competidores, escesos iónicos y formas químicas de distinta disponibilidad.
 Absorción Iónica Selectiva en Raíces.
Esta selectividad es fundamental porque el suelo no presenta a la planta una solución “limpia” de nutrientes, sino una mezcla compleja de cationes, aniones, compuestos orgánicos, sales disueltas, coloides, protones, microorganismos y sustancias en diferentes grados de movilidad o bloqueo. En ese entorno, la raíz debe operar como un sistema de filtro biológico y electroquímico, capaz de mantener el equilibrio interno de la planta sin perder eficiencia nutricional. Por ello, la absorción no depende solamente de la abundancia externa de un elemento, sino de la interacción entre disponibilidad química, actividad metabólica, demanda biológica y capacidad de transporte de membrana.
El punto clave donde ocurre esta discriminación es la membrana plasmática de las células radicales. Esta membrana funciona como una barrera selectiva que separa el medio externo del citoplasma y contiene proteínas especializadas, como canales iónicos, transportadores y bombas, que controlan el paso de los nutrientes. Gracias a esta maquinaria, la planta puede favorecer, restringir o acoplar la entrada de determinados iones según el estado nutrimental, la etapa fenológica, las condiciones del suelo y el balance interno entre crecimiento, osmorregulación y metabolismo.
Desde el punto de vista funcional, la selectividad iónica se expresa en varios niveles. Primero, la raíz puede diferenciar entre nutrientes esenciales y iones potencialmente tóxicos o competitivos. Segundo, puede modular la absorción de acuerdo con la concentración externa: en condiciones de baja disponibilidad activa sistemas de alta afinidad, y cuando la concentración aumenta puede recurrir a mecanismos de menor afinidad o restringir la entrada para evitar desequilibrios. Tercero, la planta coordina la absorción de iones con su balance de cargas, su pH interno y sus necesidades metabólicas, lo que explica por qué no todos los nutrientes se absorben al mismo tiempo ni con la misma intensidad.
En términos fisiológicos, los nutrientes llegan a la raíz principalmente disueltos en la solución del suelo y avanzan hacia su superficie por flujo de masa, difusión e intercepción radical. Sin embargo, una vez que alcanzan la rizósfera inmediata, la verdadera absorción ocurre solo cuando cruzan la membrana plasmática. A partir de ahí, el ion puede incorporarse al simplasto, movilizarse célula a célula o ser cargado hacia tejidos vasculares para su distribución al resto de la planta. Es en ese cruce de membrana donde la selectividad adquiere su mayor relevancia, porque es ahí donde la planta invierte energía, regula afinidades y coordina su nutrición mineral.
Este proceso también explica por qué la eficiencia nutrimental no depende exclusivamente de la fertilización aplicada. Un suelo puede contener nitrógeno, fósforo, potasio, calcio, magnesio o azufre, pero si la raíz no tiene suficiente actividad metabólica, si el gradiente electroquímico es débil, si la microbiología del entorno es limitada o si los nutrientes permanecen en formas poco transformables, la absorción efectiva será menor. En otras palabras, la selectividad no solo define qué nutriente puede entrar, sino también bajo qué condiciones el sistema suelo–raíz está realmente preparado para hacerlo.
Si la absorción iónica selectiva depende de una interacción fina entre membrana, energía celular, transformación química y actividad del microbioma, entonces cualquier tecnología capaz de mejorar la funcionalidad del entorno radical puede impactar indirectamente este proceso. En el caso de Germen Energy y Germen Energy Red, el valor no estaría solo en acompañar la absorción desde la raíz, sino en contribuir a que el suelo y el subsuelo mantengan una dinámica biológica y química más activa, favoreciendo la movilización de nutrientes, la transformación de compuestos bloqueados y un ambiente más apto para que la raíz ejerza esa selectividad con mayor eficiencia.
Por ello, la absorción iónica selectiva debe entenderse como un proceso que integra tres dimensiones. La primera es la fisiológica, porque depende de transportadores, membranas y gasto energético. La segunda es la edáfica, porque está condicionada por pH, conductividad, capacidad de intercambio, salinidad, materia orgánica y formas químicas de los nutrientes. La tercera es la biológica, porque la actividad microbiana y los procesos metabólicos del suelo influyen en la transformación, liberación y disponibilidad de muchas fracciones minerales. Solo cuando estas tres dimensiones se articulan de manera favorable, la planta puede expresar una nutrición verdaderamente eficiente.
3. La H+-ATPasa como motor bioenergético de la absorción mineral
Si la absorción iónica selectiva es el proceso que permite a la raíz decidir qué nutrientes entran, la H+-ATPasa de membrana plasmática es el motor que suministra la energía para que esa selectividad ocurra. Esta enzima expulsa protones (H+) desde el citoplasma hacia el exterior celular utilizando ATP, y con ello genera dos condiciones esenciales: un gradiente de pH y un potencial eléctrico de membrana. Juntos forman la llamada fuerza protón-motriz, base bioenergética que impulsa el transporte de numerosos nutrientes a través de la membrana de las células radicales.
 La H±ATPasa como motor bioenergético de la absorción mineral.
Desde el punto de vista funcional, la H+-ATPasa cumple una tarea decisiva: deja el interior de la célula relativamente más negativo y el espacio externo más enriquecido en protones. Esa diferencia electroquímica no es un detalle accesorio, sino la condición que permite que muchos cationes entren favorecidos por el potencial eléctrico, mientras que numerosos aniones ingresan acoplados al retorno de H+ mediante cotransportadores. Por eso, cuando la actividad de la H+-ATPasa aumenta, la raíz suele ganar capacidad para sostener flujos de absorción más eficientes, especialmente en condiciones donde la captación depende de sistemas de alta afinidad o de una fuerte energización de membrana.
En términos sencillos, la H+-ATPasa no “mete” directamente nitrato, fosfato, potasio o calcio; lo que hace es crear el escenario energético para que esos nutrientes puedan entrar por sus respectivas vías de transporte. En el caso de muchos cationes, el interior negativo de la célula favorece su ingreso a través de canales o transportadores selectivos. En el caso de aniones como nitrato, el gradiente de protones generado por la bomba permite el funcionamiento de sistemas de simporte H+/anión. Por eso, la H+-ATPasa debe entenderse como el centro energético que conecta metabolismo, transporte de membrana y eficiencia nutrimental.
Este papel central se ha documentado con claridad en maíz. Estudios en raíces mostraron que la inducción de la absorción de nitrato se asocia con la expresión de transportadores de alta afinidad y con isoformas de H+-ATPasa en membrana plasmática, lo que respalda la idea de que la captación de este anión depende estrechamente de la energización de membrana. En otras palabras, la disponibilidad de nitrato en el entorno no basta por sí sola: la raíz necesita sostener un estado bioenergético adecuado para absorberlo eficientemente.
La importancia de esta enzima también va más allá del simple transporte. Las H+-ATPasas participan en la acidificación de la rizósfera, en la regulación del crecimiento celular y en la interacción con microorganismos simbióticos, incluido su papel en la adquisición mineral mediada por asociaciones micorrícicas, según revisiones recientes. Esto ayuda a explicar por qué la eficiencia nutrimental no puede reducirse a una lectura de concentración de nutrientes en suelo: depende igualmente de la capacidad de la raíz para mantener activo su sistema energético, modular su entorno químico y sostener intercambios funcionales con el microbioma.
Desde la perspectiva agronómica, esto tiene implicaciones profundas. En suelos con salinidad, compactación, desbalances ácido-base, exceso de amonio o nutrientes bloqueados, el problema no siempre es la ausencia del nutriente, sino la pérdida de funcionalidad del sistema que debería transformarlo, movilizarlo y absorberlo. Si la bioenergética de membrana se debilita o si el entorno radical reduce la actividad biológica y la disponibilidad efectiva de iones, la raíz pierde capacidad de respuesta. Por eso, fortalecer los procesos metabólicos vinculados con la H+-ATPasa y con la dinámica del suelo puede traducirse en una mejora real de la absorción mineral. Esta última conexión es una inferencia fisiológica y agronómica apoyada por el papel central de las PMA en adquisición nutrimental y por evidencia de respuestas de raíz a compuestos bioactivos.
Aquí es donde el enfoque de Germen Energy y Germen Energy Red adquiere una lectura más robusta. Si la H+-ATPasa es el motor bioenergético que sostiene la absorción iónica, entonces cualquier tecnología capaz de estimular la actividad metabólica del sistema suelo–raíz–microbioma puede favorecer indirectamente el contexto donde esta bomba expresa mejor su función. En ese sentido, el valor de una formulación de acción integral no reside solo en aportar una fracción orgánica específica, sino en contribuir a reactivar procesos que mejoran la transformación de compuestos bloqueados, la actividad celular del suelo, la dinámica del intercambio iónico y la funcionalidad del entorno radical. Así, la eficiencia de absorción no se aborda únicamente desde la membrana, sino desde la recuperación del sistema que la alimenta y la sostiene. Esta aplicación a la línea Germen debe presentarse como posicionamiento técnico sustentado en mecanismo general y en validación propia de producto. La H+-ATPasa no es un componente secundario de la nutrición vegetal, sino el eje energético sobre el cual descansa gran parte de la absorción selectiva de nutrientes. Comprender su función permite conectar la fisiología clásica de membrana con una visión más moderna del manejo agronómico: activar la raíz, activar el suelo y activar los procesos metabólicos que hacen posible una nutrición más eficiente.
4. Entrada de cationes y aniones: canales y cotransportadores
Una vez que la H+-ATPasa establece el gradiente electroquímico, la absorción selectiva de nutrientes depende de dos grandes tipos de sistemas de transporte en la membrana plasmática de la raíz: los canales iónicos, que favorecen sobre todo el movimiento de ciertos cationes, y los cotransportadores, que aprovechan la fuerza protón-motriz para introducir aniones junto con H+. Esta distinción es clave porque explica por qué la planta no incorpora todos los nutrientes por la misma vía ni con el mismo costo energético.

Entrada de Cationes y Aniones: Canales y Cotransportadores.
En el caso de los cationes como K+, Ca2+ y Mg2+, el interior relativamente negativo de la célula radical genera una condición eléctrica favorable para su ingreso. En términos generales, el potasio suele entrar a través de canales y transportadores altamente regulados, mientras que calcio y magnesio dependen de redes más complejas de canales, transportadores y sistemas de homeostasis, ya que además de ser nutrientes también participan en señalización y balance iónico. La planta, por tanto, no solo “deja pasar” cationes: ajusta su entrada según demanda metabólica, concentración externa, competencia entre iones y estado fisiológico del tejido radical.
El potasio (K+) es probablemente el ejemplo más representativo de este grupo, porque su absorción ilustra muy bien el papel del potencial de membrana. Cuando la H+-ATPasa mantiene un interior celular negativo, el ingreso de K+ se vuelve energéticamente favorable a través de canales selectivos o transportadores de alta afinidad, dependiendo de la disponibilidad en el suelo. Esto tiene consecuencias directas sobre turgencia, apertura estomática, activación enzimática y crecimiento. Por eso, cualquier alteración del estado energético de la membrana o del entorno radical puede modificar de manera importante la eficiencia de absorción de este catión.
En contraste, muchos aniones no pueden aprovechar por sí solos el potencial eléctrico de la membrana, porque el interior negativo de la célula no favorece su entrada pasiva. Para resolverlo, la planta utiliza cotransportadores dependientes de protones, también llamados simportadores H+/anión. En este mecanismo, el anión entra acoplado al retorno de H+ hacia el citoplasma, utilizando la energía almacenada en el gradiente creado previamente por la H+-ATPasa. Este principio es especialmente importante para nutrientes como el nitrato (NO3−) y el fosfato inorgánico, cuya absorción depende fuertemente de la fuerza protón-motriz y de proteínas transportadoras específicas.
El nitrato es uno de los casos mejor estudiados. La evidencia disponible muestra que su transporte en raíces está mediado por familias de transportadores que operan mediante simporte con protones, y que su actividad puede variar según la concentración externa de nitrato, el estado nutricional de la planta y la regulación postraduccional de los transportadores. Esto significa que la absorción de NO3− no depende solo de que el ion esté presente en la solución del suelo, sino de que el sistema de membrana tenga energía suficiente, de que el transportador correcto esté activo y de que exista coordinación con el metabolismo del nitrógeno.
Con el fosfato ocurre algo similar desde el punto de vista bioenergético, aunque con una limitante agronómica adicional: en muchos suelos, especialmente alcalinos o con alta fijación, una parte importante del fósforo permanece inmovilizada o en formas de baja disponibilidad. Incluso cuando hay fosfato en la rizósfera, su entrada a la raíz sigue requiriendo transportadores específicos acoplados al gradiente de protones. Por eso, la eficiencia real de absorción fosfatada depende de una doble condición: que el fósforo se encuentre en forma accesible y que la membrana radical conserve la energía y la funcionalidad necesarias para captarlo.
Desde una perspectiva fisiológica, esto ayuda a entender que la absorción mineral no es un proceso uniforme, sino una red coordinada de rutas con distinta afinidad, selectividad y regulación. Los canales de cationes suelen responder con rapidez a cambios eléctricos y a señales fisiológicas, mientras que los cotransportadores de aniones dependen de manera más explícita de la fuerza protón-motriz y de mecanismos finos de control molecular. En conjunto, ambos sistemas permiten que la planta mantenga equilibrio de cargas, ajuste osmótico, nutrición mineral y capacidad de respuesta frente a deficiencia, exceso salino o estrés ambiental.
Aquí vuelve a ser útil el enfoque de Germen. Si la entrada de cationes y aniones depende de que exista un entorno radical activo, una membrana energizada y una disponibilidad química realmente funcional, entonces una tecnología orientada a activar procesos metabólicos del suelo y del microbioma puede influir de manera indirecta, pero agronómicamente relevante, en esta etapa del proceso. En el caso de Germen Energy y Germen Energy Red, el valor técnico puede comunicarse como la capacidad de favorecer un medio más dinámico para la transformación, liberación y movilización de nutrientes, creando mejores condiciones para que los canales y cotransportadores radicales expresen su función con mayor eficiencia. Esta conexión debe formularse como un puente mecanístico y agronómico entre fisiología de membrana y desempeño del sistema suelo–raíz.
La idea central de esta sección es que la raíz absorbe nutrientes por rutas distintas pero complementarias: los cationes aprovechan sobre todo el potencial eléctrico generado por la H+-ATPasa, mientras los aniones dependen en gran medida de cotransportadores acoplados al retorno de protones. Comprender esta diferencia permite explicar con mayor claridad por qué la eficiencia nutrimental depende tanto de la bioenergética de membrana como de la calidad funcional del suelo que rodea a la raíz.
5. Rizósfera, pH y disponibilidad nutrimental
La rizósfera es la franja de suelo directamente influida por la raíz y por la actividad biológica asociada a ella. No es un medio estático: su pH, su potencial redox, la concentración local de nutrientes, la presencia de exudados y la composición microbiana cambian de forma continua conforme la raíz absorbe iones, excreta protones y libera compuestos orgánicos. Por eso, la disponibilidad nutrimental real no depende solo del análisis químico del suelo a granel, sino de lo que ocurre en esta microzona activa donde se define la absorción efectiva.
Uno de los reguladores más importantes de esta microzona es el pH rizosférico. La actividad de la H+-ATPasa y el balance entre absorción de cationes y aniones pueden acidificar o alcalinizar localmente el entorno radical, modificando la solubilidad de distintos elementos. La literatura reciente resume que las H+-ATPasas contribuyen a la adquisición de nutrientes no solo por energizar el transporte de membrana, sino también por promover la acidificación del apoplasto y de la rizósfera.
Ese cambio local de pH tiene implicaciones agronómicas directas. La acidificación rizosférica puede favorecer la movilización de ciertos nutrientes poco disponibles, especialmente en contextos de baja disponibilidad de fósforo o de micronutrientes cuya solubilidad depende fuertemente del pH. También influye en la desorción de cationes retenidos en coloides del suelo, al intercambiar protones por nutrientes adsorbidos. Diversas fuentes describen esta acidificación como un mecanismo central de la nutrición mineral y de la tolerancia a deficiencias, particularmente en el caso del fósforo y del hierro.
 Rizósfera, pH y Disponibilidad Nutrimental.
Además del pH, la raíz modifica la disponibilidad nutrimental mediante exudados radicales. Ácidos orgánicos, azúcares, aminoácidos, fenoles y otros metabolitos pueden cambiar propiedades fisicoquímicas del suelo, quelar compuestos, alimentar microorganismos benéficos y facilitar la transformación de nutrientes hacia formas más accesibles. Las revisiones disponibles coinciden en que los exudados son arquitectos químicos de la rizósfera: moldean el microbioma, alteran ciclos de carbono y nutrientes y ayudan a la planta a adaptarse a condiciones adversas.
Esto explica por qué la disponibilidad nutrimental no debe interpretarse únicamente como “cantidad total presente”. En muchos suelos agrícolas hay fósforo, azufre, calcio, magnesio o nitrógeno, pero una fracción relevante puede permanecer retenida, precipitada, adsorbida o asociada a matrices de baja transformación biológica. En esos casos, la raíz necesita un entorno activo que combine acidificación localizada, exudación funcional y actividad microbiana suficiente para movilizar esas reservas. El comportamiento del pH en rizósfera, de hecho, puede variar significativamente según la absorción de nutrientes, la capacidad tampón del suelo y la reacción con la fase sólida.
La dimensión biológica es igual de importante. Los microorganismos rizosféricos responden a los exudados de la raíz y, a su vez, pueden favorecer la solubilización de nutrientes, la producción de metabolitos útiles, la formación de biofilms y la estabilización de interacciones beneficiosas para la planta. En conjunto, raíz y microbioma forman una unidad funcional que amplía la capacidad del cultivo para explorar, transformar y absorber recursos del suelo.
Desde la perspectiva de Germen, esta sección es estratégica porque permite mover la conversación desde la “absorción de un ion” hacia la funcionalidad integral del entorno radical. Si la disponibilidad depende de pH local, exudación, intercambio catiónico, actividad microbiológica y transformación de compuestos retenidos, entonces una tecnología orientada a la estimulación metabólica del sistema suelo–raíz–microbioma puede tener un impacto relevante en la eficiencia nutrimental. En ese marco encaja el posicionamiento de Germen Energy y Germen Energy Red: no solo como herramientas para acompañar el crecimiento, sino como promotores de una rizósfera más activa, con mayor dinamismo biológico y químico, capaz de favorecer el desbloqueo de fracciones inmovilizadas y mejorar el ambiente donde ocurre la absorción selectiva. Esta última conexión debe presentarse como una inferencia agronómica coherente con el mecanismo general y respaldada por la validación propia de producto.
La idea central es clara: la raíz no absorbe nutrientes desde un suelo químicamente inerte, sino desde una rizósfera viva cuyo pH, exudados y actividad microbiana condicionan la disponibilidad real de los elementos. Entender esto permite explicar por qué la nutrición eficiente depende tanto de la membrana plasmática como de la capacidad del sistema suelo para mantenerse metabólicamente activo.
6. Relación entre absorción iónica, crecimiento radical y vigor vegetal
La absorción iónica selectiva no puede separarse del desarrollo físico de la raíz. Aunque los transportadores de membrana, los canales iónicos y la H+-ATPasa determinan la entrada de nutrientes a escala celular, la eficiencia real del proceso también depende de la arquitectura radical, de la densidad de pelos absorbentes, de la formación de raíces laterales y de la capacidad del cultivo para explorar mayor volumen de suelo. En términos agronómicos, una raíz activa no solo absorbe mejor porque tiene transportadores funcionales, sino porque dispone de más superficie efectiva de contacto con la solución del suelo.
 Absorción Iónica, Crecimiento Radical y Vigor Vegetal.
Los pelos radicales son particularmente importantes en este punto, ya que aumentan de forma notable el área de absorción y mejoran el acceso a nutrientes poco móviles, especialmente fósforo, zinc y algunos micronutrientes. Su presencia también amplía la interfase de intercambio entre raíz, agua, coloides y microbioma. Así, cuando la planta desarrolla una mayor densidad de pelos radicales y una epidermis fisiológicamente activa, la absorción selectiva gana eficiencia tanto por mayor contacto físico como por una mejor capacidad de intercambio transmembrana. Esta relación entre morfología radical y adquisición de nutrientes ha sido ampliamente documentada en fisiología vegetal y biología de raíces (López-Bucio et al., 2003; Jungk, 2001).
Además de los pelos radicales, la emisión de raíces laterales y el incremento en longitud total del sistema radical determinan cuánto suelo puede explorar la planta. En ambientes donde los nutrientes están distribuidos de manera heterogénea o donde existen zonas de compactación, salinidad o inmovilización química, una arquitectura radical más plástica representa una ventaja fisiológica clara. La planta no solo necesita absorber iones; necesita encontrarlos en un entorno donde muchas veces la disponibilidad real es baja o irregular. Por eso, el crecimiento radical y la absorción iónica deben entenderse como procesos complementarios: uno amplía el territorio de exploración y el otro hace posible la entrada selectiva de nutrientes en cada punto de contacto.
Este vínculo también se refleja en el vigor vegetal. Cuando la raíz absorbe con mayor eficiencia potasio, nitrógeno, calcio, magnesio, fósforo y otros elementos esenciales, la planta mejora procesos centrales como osmorregulación, fotosíntesis, síntesis de biomasa, actividad enzimática, transporte de azúcares y respuesta al estrés. A su vez, una planta con mejor estado metabólico sostiene con mayor facilidad el crecimiento radical, cerrando un ciclo positivo entre nutrición, energía y desarrollo. Por eso, desde una visión funcional, el vigor aéreo y el vigor radical no son fenómenos independientes: ambos forman parte de una misma red fisiológica.
La relación también opera en sentido inverso. Cuando el sistema radical se ve limitado por hipoxia, salinidad, daño químico, baja actividad biológica del suelo o acumulación de compuestos recalcitrantes, la absorción iónica pierde eficiencia aunque exista fertilidad potencial. En esos casos, la planta reduce exploración, disminuye formación de raíces finas, altera exudación y pierde capacidad de sostener un gradiente electroquímico robusto en la membrana. El resultado suele ser una nutrición más errática, desequilibrios internos y una menor capacidad para sostener crecimiento vegetativo o reproductivo.
Aquí es donde el enfoque de Germen encaja de manera más clara. Si la absorción iónica depende de la funcionalidad de la membrana, pero también de la calidad estructural y metabólica del sistema radical, entonces una tecnología que active procesos celulares y microbiológicos del suelo puede repercutir directamente en el vigor de la raíz. En el caso de Germen Energy y Germen Energy Red, el valor técnico puede plantearse como la capacidad de favorecer un entorno que estimule la exploración radical, la actividad fisiológica de la raíz y la transformación de compuestos bloqueados que limitan el desarrollo del cultivo. No se trataría solo de promover “más raíz” en sentido visual, sino de inducir una raíz más funcional, con mayor capacidad para sostener intercambio iónico, interacción microbiológica y aprovechamiento nutrimental.
Este punto es especialmente relevante en suelos donde la limitación no es únicamente nutricional, sino también fisicoquímica y biológica. Cuando el subsuelo presenta acumulación de sales, compuestos amoniacales, fósforo inmovilizado, sulfatos retenidos, residuos orgánicos de difícil desdoblamiento o contaminación por hidrocarburos, el sistema radical enfrenta una barrera doble: menor disponibilidad efectiva y menor funcionalidad del entorno. Bajo esas condiciones, mejorar el vigor radical implica también mejorar el medio donde la raíz vive, respira y absorbe. Desde esta perspectiva, la bioestimulación integral deja de ser un apoyo periférico y se convierte en una estrategia para restaurar capacidad de exploración y de absorción.
La idea central de esta sección es que la eficiencia nutrimental no depende solo de transportadores bien regulados, sino de una raíz con estructura, energía y entorno adecuados para expresar esa capacidad. Cuanto mayor es la superficie absorbente, la plasticidad radical y la actividad metabólica del sistema suelo–raíz, mayor es la posibilidad de traducir disponibilidad potencial en absorción real, y absorción real en vigor agronómico.
7. Bioestimulantes orgánicos de la estimulación puntual a la bioactivación integral del sistema suelo–raíz–planta
En el marco de la absorción iónica selectiva, los bioestimulantes orgánicos no deben interpretarse únicamente como complementos del programa de fertilización, sino como herramientas capaces de modificar procesos fisiológicos, biológicos y fisicoquímicos que determinan la eficiencia real de la nutrición vegetal. La definición moderna de bioestimulante vegetal se apoya precisamente en esa lógica: mejorar la eficiencia en el uso de nutrientes, la tolerancia al estrés abiótico, la calidad del cultivo o la disponibilidad nutrimental en la rizósfera, independientemente de un aporte directo relevante de fertilizantes (du Jardin, 2015). Bajo esta visión, el interés técnico ya no se centra solo en “qué contiene” un producto, sino en qué procesos activa dentro del sistema suelo–planta.
 Bioactivación del Sistema Suelo-Planta.
Sin embargo, para construir una discusión rigurosa, es necesario distinguir entre bioestimulantes de acción específica y bioestimulantes complejos o compuestos. Los primeros suelen basarse en un componente dominante —por ejemplo, sustancias húmicas, extractos de algas, aminoácidos, péptidos o microorganismos particulares— y normalmente muestran efectos más focalizados sobre ciertas rutas, como arquitectura radical, señalización fisiológica, tolerancia al estrés o disponibilidad local de nutrientes. Los segundos, en cambio, se diseñan para intervenir simultáneamente sobre varias dimensiones del sistema productivo: metabolismo celular de la planta, actividad microbiológica del suelo, transformación de compuestos retenidos, dinámica de la rizósfera y funcionalidad química del subsuelo. Esta distinción es clave, porque evita reducir toda la bioestimulación a un solo mecanismo y permite ubicar mejor el valor de tecnologías más integrales.
La literatura científica ha documentado con solidez el papel de varias categorías clásicas de bioestimulantes. Las sustancias húmicas, por ejemplo, han sido asociadas con elongación de raíces, emergencia de raíces laterales y aumento en la actividad de la H+-ATPasa de membrana plasmática, un punto especialmente relevante para este artículo porque conecta directamente la bioestimulación con el motor bioenergético de la absorción mineral (Canellas et al., 2002; Nardi et al., 2002). De manera similar, los hidrolizados proteicos y fracciones peptídicas han mostrado efectos sobre crecimiento, metabolismo, respuesta al estrés y relaciones con el microbioma, actuando no solo como fuente orgánica funcional, sino también como moduladores fisiológicos (Colla et al., 2017). Los extractos de algas, por su parte, se han vinculado con mejoras en vigor, resiliencia y desempeño del cultivo bajo condiciones limitantes (Ali et al., 2021). Todas estas categorías son valiosas y ayudan a entender cómo la nutrición puede mejorarse desde procesos distintos al simple suministro de nutrientes.
No obstante, en muchos escenarios agronómicos reales el problema no se limita a una deficiencia puntual ni a una sola vía fisiológica alterada. En suelos agrícolas con sales acumuladas, nitrógeno amoniacal, fósforo o azufre bloqueados, compuestos orgánicos recalcitrantes, desequilibrios ácido-base, baja actividad biológica o deterioro fisicoquímico del subsuelo, la limitación es sistémica. La raíz no solo enfrenta menor disponibilidad inmediata de nutrientes, sino también un entorno metabólicamente restringido para transformarlos, movilizarlos e incorporarlos. En estos contextos, una bioestimulación basada en una sola fracción activa puede resultar insuficiente para explicar o resolver toda la complejidad del sistema. Por eso cobra sentido hablar de bioestimulantes complejos o compuestos, capaces de actuar sobre múltiples procesos a la vez.
Desde esta perspectiva, el valor de una formulación compleja no reside únicamente en reunir varios ingredientes, sino en generar una sinergia funcional entre ellos. La verdadera diferencia aparece cuando la formulación contribuye a activar la respiración biológica del suelo, estimular la actividad microbiana, favorecer rutas facultativas de transformación, mejorar la dinámica de intercambio, apoyar el desdoblamiento de moléculas recalcitrantes y crear un ambiente más favorable para la raíz. En otras palabras, el objetivo deja de ser solo estimular crecimiento visible y pasa a ser reactivar el sistema que hace posible la absorción. Esa es una distinción estratégica y científica importante: no se trata solo de “más raíz”, sino de más funcionalidad radical y más actividad del entorno donde la raíz opera.
Bajo ese marco, Germen Energy y Germen Energy Red no conviene posicionarlos como equivalentes a bioestimulantes de un solo componente ni como si su valor dependiera exclusivamente de una categoría clásica como húmicos, fúlvicos, algas o péptidos. Aunque pueden compartir puntos de contacto con varios mecanismos reconocidos en la literatura, su propuesta de valor debe expresarse mejor como la de soluciones de bioactivación metabólica integral. Es decir, tecnologías orientadas a intervenir sobre el sistema suelo–raíz–microbioma de manera más amplia, promoviendo actividad celular, transformación de compuestos retenidos, movilización de nutrientes bloqueados y recuperación funcional de ambientes con restricciones químicas o biológicas.
En esta narrativa, la relación con la absorción iónica selectiva se vuelve mucho más robusta. La raíz solo puede captar eficientemente cationes y aniones si existen tres condiciones: una membrana energizada, una rizósfera funcional y una disponibilidad química realmente activa. Cuando una formulación contribuye a mejorar la dinámica microbiológica, a desbloquear fracciones retenidas, a favorecer el intercambio catiónico, a modular la conductividad efectiva del suelo y a sostener procesos metabólicos en el subsuelo, entonces está influyendo sobre el contexto donde la absorción selectiva se vuelve posible. Así, el efecto no se limita al transporte transmembrana en sentido estricto, sino que alcanza la base biológica y fisicoquímica que alimenta ese transporte.
Este enfoque también permite comunicar con mayor precisión aplicaciones diferenciales de la línea Germen. Según lo que se ha observado en validaciones internas y usos en campo, sus formulaciones no solo muestran pertinencia en suelos agrícolas convencionales, sino también en matrices más complejas donde existen hidrocarburos, sales, cargas amoniacales, bloqueos de sulfatos y fosfatos, residuos de difícil degradación o alteraciones fisicoquímicas severas. En esos casos, el objetivo agronómico deja de ser únicamente mejorar la nutrición inmediata del cultivo y pasa a incluir la rehabilitación funcional del entorno radical y del subsuelo. Ese punto es especialmente diferenciador, porque desplaza el discurso desde la bioestimulación clásica hacia una lógica de reactivación metabólica más amplia.
Por ello, en esta sección conviene sostener una idea central: no todos los bioestimulantes orgánicos operan con el mismo alcance funcional. Algunos están orientados a una respuesta fisiológica puntual; otros a una categoría específica de señalización o crecimiento; y otros, como puede plantearse para la línea Germen, buscan una intervención más integral sobre la actividad biológica, química y metabólica del sistema suelo–planta. Esta distinción no debilita a las categorías clásicas; al contrario, las ordena mejor y permite argumentar por qué una formulación compleja puede mostrar un rango de acción más amplio en condiciones productivas desafiantes.
En consecuencia, el papel de los bioestimulantes orgánicos dentro de la absorción iónica selectiva no debe describirse únicamente como un apoyo al desarrollo de raíces o a la captación de nutrientes. Su función más profunda consiste en modular el ecosistema funcional donde ocurre la absorción: la energía de membrana, la arquitectura radical, la actividad microbiológica, la transformación de compuestos retenidos, la dinámica del pH y la disponibilidad efectiva de nutrientes en la rizósfera y el subsuelo. En el caso de Germen, esto permite construir una narrativa científica y comercial más sólida: no solo estimular la planta, sino reactivar el sistema vivo que sostiene su nutrición, su vigor y su resiliencia.
9. Conclusión
La absorción iónica selectiva en raíces es mucho más que un mecanismo de entrada de nutrientes a través de la membrana plasmática. Es el resultado de una interacción compleja entre bioenergética celular, arquitectura radical, actividad microbiológica, dinámica de la rizósfera y funcionalidad fisicoquímica del suelo. Cuando este sistema opera de forma eficiente, la planta no solo absorbe mejor cationes y aniones esenciales, sino que también expresa mayor vigor, mejor equilibrio osmótico, mayor resiliencia al estrés y una respuesta agronómica más consistente
 Tecnología de Bioactivación Metabólica Integral.
Desde esta perspectiva, la nutrición vegetal no puede reducirse a la dosis aplicada de fertilizantes. En numerosos sistemas productivos, la verdadera limitante está en la movilización, transformación y disponibilidad funcional de los nutrientes, especialmente cuando existen sales, compuestos bloqueados, residuos recalcitrantes, desequilibrios ácido-base o deterioro biológico del subsuelo. En esos escenarios, mejorar la fisiología de la raíz implica también mejorar el entorno donde la raíz vive, intercambia y absorbe.
Ahí es donde una tecnología de bioactivación metabólica integral cobra relevancia. Más que estimular una sola ruta fisiológica, soluciones como Germen Energy y Germen Energy Red pueden posicionarse como herramientas orientadas a reactivar el sistema suelo–raíz–microbioma, favoreciendo actividad celular, transformación de compuestos retenidos, movilización nutrimental y recuperación funcional del entorno radical. Ese es el punto donde la fisiología vegetal se convierte en valor agronómico tangible.
No basta con aplicar nutrientes: hay que activar el sistema que los vuelve disponibles, absorbibles y productivos. Con Germen Energy y Germen Energy Red, Germen impulsa una estrategia de bioactivación integral para transformar suelos limitados en sistemas más funcionales, más vivos y más eficientes.
Activa la raíz. Reactiva el suelo. Potencia la nutrición desde su origen.
Referencias
-
Ali, O., Ramsubhag, A., & Jayaraman, J. (2021). Biostimulant properties of seaweed extracts in plants: Implications towards sustainable crop production. Plants, 10(3), 531. https://doi.org/10.3390/plants10030531
-
Blatt, M. R. (2024). A charged existence: A century of transmembrane ion transport in plants. Plant Physiology, 195(1), 79–110. https://doi.org/10.1093/plphys/kiad630
-
Canellas, L. P., Olivares, F. L., Okorokova-Façanha, A. L., & Façanha, A. R. (2002). Humic acids isolated from earthworm compost enhance root elongation, lateral root emergence, and plasma membrane H+-ATPase activity in maize roots. Plant Physiology, 130(4), 1951–1957. https://doi.org/10.1104/pp.007088
-
Colla, G., Hoagland, L., Ruzzi, M., Cardarelli, M., Bonini, P., Canaguier, R., & Rouphael, Y. (2017). Biostimulant action of protein hydrolysates: Unraveling their effects on plant physiology and microbiome. Frontiers in Plant Science, 8, 2202. https://doi.org/10.3389/fpls.2017.02202
-
du Jardin, P. (2015). Plant biostimulants: Definition, concept, main categories and regulation. Scientia Horticulturae, 196, 3–14. https://doi.org/10.1016/j.scienta.2015.09.021
-
Fan, X., Naz, M., Fan, X., Xuan, W., & Miller, A. J. (2017). Plant nitrate transporters: From gene function to application. Journal of Experimental Botany, 68(10), 2463–2475. https://doi.org/10.1093/jxb/erx011
- Jungk, A. (2001). Root hairs and the acquisition of plant nutrients from soil. Journal of Plant Nutrition and Soil Science, 164(2), 121–129. https://doi.org/10.1002/1522-2624(200104)164:2<121::AID-JPLN121>3.0.CO;2-I
-
Kaushal, P., Ali, N., Saini, S., Pati, P. K., & Pati, A. M. (2023). Physiological and molecular insight of microbial biostimulants for sustainable agriculture. Frontiers in Plant Science, 14, 1041413. https://doi.org/10.3389/fpls.2023.1041413
-
López-Bucio, J., Cruz-Ramírez, A., & Herrera-Estrella, L. (2003). The role of nutrient availability in regulating root architecture. Current Opinion in Plant Biology, 6(3), 280–287. https://doi.org/10.1016/S1369-5266(03)00035-9
-
Lynch, J. P. (2011). Root phenes for enhanced soil exploration and phosphorus acquisition: Tools for future crops. Plant Physiology, 156(3), 1041–1049. https://doi.org/10.1104/pp.111.175414
- Miller, A. J., Fan, X., Orsel, M., Smith, S. J., & Wells, D. M. (2007). Nitrate transport and signalling. Journal of Experimental Botany, 58(9), 2297–2306. https://doi.org/10.1093/jxb/erm066
-
Nardi, S., Pizzeghello, D., Muscolo, A., & Vianello, A. (2002). Physiological effects of humic substances on higher plants. Soil Biology and Biochemistry, 34(11), 1527–1536. https://doi.org/10.1016/S0038-0717(02)00174-8
-
Paez-Garcia, A., Motes, C. M., Scheible, W.-R., Chen, R., Blancaflor, E. B., & Monteros, M. J. (2015). Root traits and phenotyping strategies for plant improvement. Plants, 4(2), 334–355. https://doi.org/10.3390/plants4020334
-
Quaggiotti, S., Ruperti, B., Borsa, P., Destro, T., & Malagoli, M. (2003). Expression of a putative high-affinity NO3− transporter and of an H+-ATPase in relation to whole plant nitrate transport physiology in two maize genotypes differently responsive to low nitrogen availability. Journal of Experimental Botany, 54(384), 1023–1031. https://doi.org/10.1093/jxb/erg106
-
Santi, S., Locci, G., Monte, R., Pinton, R., & Varanini, Z. (2003). Induction of nitrate uptake in maize roots: Expression of a putative high-affinity nitrate transporter and plasma membrane H+-ATPase isoforms. Journal of Experimental Botany, 54(389), 1851–1864. https://doi.org/10.1093/jxb/erg208
- Wang, Y., & Wu, W.-H. (2009). Moving cationic minerals to edible tissues: Potassium, magnesium, calcium. Current Opinion in Plant Biology, 12(3), 291–297. https://doi.org/10.1016/j.pbi.2009.01.008
-
Zeng, H., Chen, H., Zhang, M., Ding, M., Xu, F., Feng, Y., Kinoshita, T., & Zhu, Y. (2024). Plasma membrane H+-ATPases in mineral nutrition and crop improvement. Trends in Plant Science, 29(9), 978–994. https://doi.org/10.1016/j.tplants.2024.02.010
Share:
Fitohormonas y Bioestimulación Orgánica
Semillas en la Encrucijada